Le mouton du néolithique à nos jours
Le mouton domestique (Ovis aries) accompagne l’évolution des sociétés méditerranéennes depuis le Néolithique. Domestiqué au Proche-Orient vers 8500-8000 ANE à partir du mouflon d’Asie occidentale (Ovis gmelini), il gagne le Nord-Ouest méditerranéen (Midi de la France et Catalogne) au début du VIᵉ millénaire ANE, avec les premières communautés néolithiques des cultures Impressa (~5800/5700–5450 ANE) puis Cardial/Epicardial ((5800-5450 / 5450-4700 ANE). Cet article retrace les transformations morphologiques et économiques de l’animal, du Néolithique à l’époque contemporaine, en présentant les choix humains (viande, lait, laine) et leur impact sur les races actuelles. La chèvre ayant une morphologie restée plus stable permet une comparaison avec la dynamique sélective du mouton.
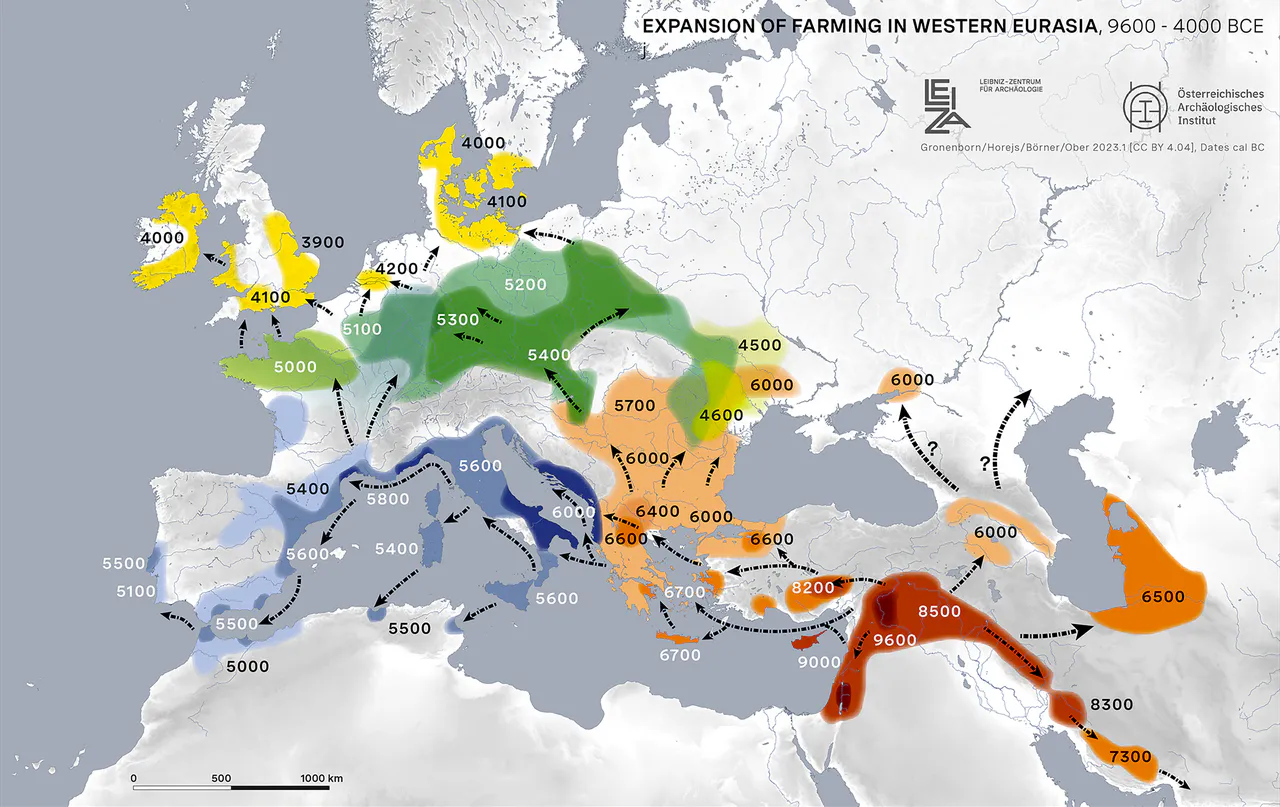
Le mouton domestique (Ovis aries) est un marqueur clé de la transformation des sociétés méditerranéennes. Son ancêtre principal est le mouflon d’Asie occidentale (Ovis gmelini). Les études génétiques récentes (Daly, K. G. et al. – 2025) le confirme. La domestication a eu lieu vers le 8500-8000 ANE dans une zone s’étendant de l’Anatolie orientale au Zagros central (Proche-Orient). Des contributions mineures d’autres lignées sauvages (ex. steppe) sont attestées, mais le mouflon d’Asie occidentale, Ovis gmelini ( = Ovis orientalis) constitue la principale lignée sauvage apparenté impliquée dans l’origine du mouton domestique. Les données génomiques récentes montrent une histoire plus complexe, avec une contribution de plusieurs populations sauvages et des épisodes ultérieurs de mélanges.
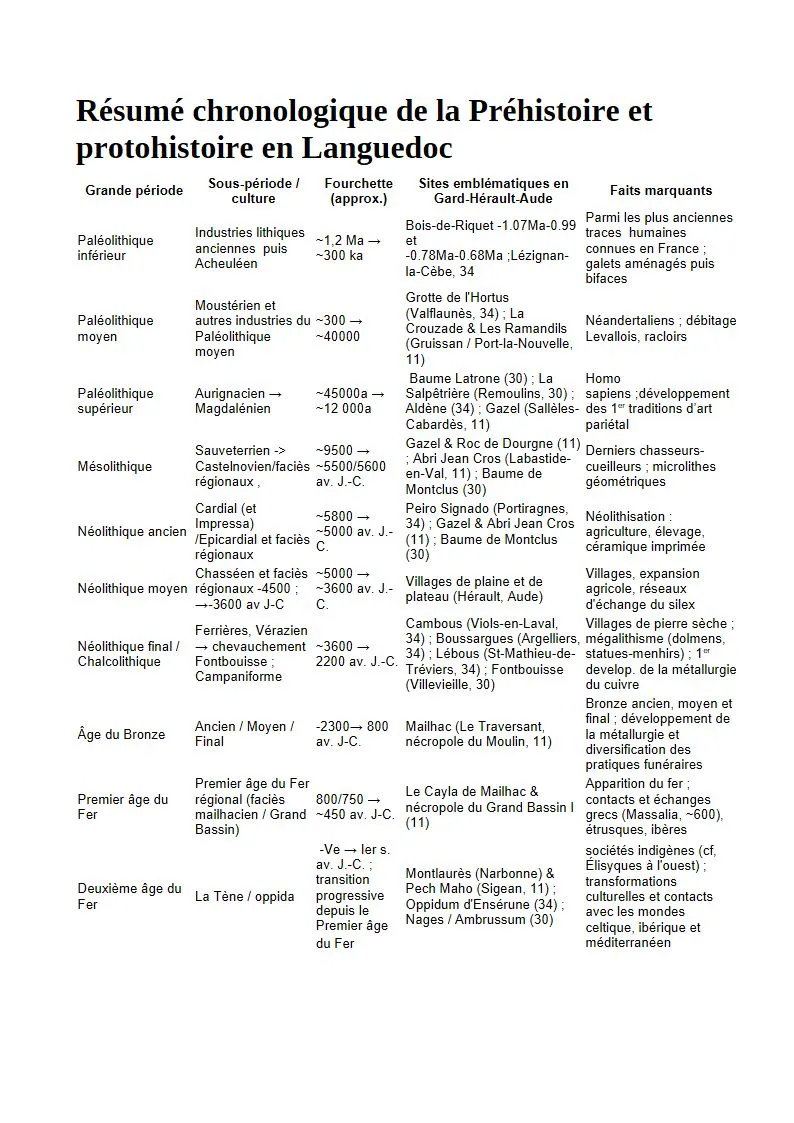
Ovis aries arrive en Méditerranée occidentale avec les premières sociétés néolithiques, où il s’intègre aux économies agropastorales. Son introduction en Languedoc est attestée au début du VIᵉ millénaire ANE, avec les cultures Impressa (début du millénaire) puis Cardial/Epicardial (5800-5 450 / 5450–4 700 ANE), comme le montrent les fouilles des sites de Taï (Remoulins) et Gazel (Sallèles-Cabardès) (Tornero et al., 2020).
Nota 1: Domestication : Les 118 génomes anciens étudiés par Daly et al. (2025) apportent de nouvelles données majeures sur l’origine et la dispersion du mouton domestique. (Daly, K. G. et al. (2025). “Ancient genomics and the origin, dispersal, and development of domestic sheep.” Science, 387(6733), 492–497. DOI: 10.1126/science.adn2094.). Ancêtre : Ovis gmelini (mouflon d’Asie) est la principale forme sauvage à l’origine du mouton domestique, mais des introgressions d’autres lignées (ex. steppe) sont possibles. Arrivée en Languedoc : VIᵉ millénaire ANE (Impressa → Cardial), confirmée par des datations radiocarbone et des réexamens stratigraphiques (ex. La Font-aux-Pigeons, Antiquity, Cambridge).
Note 2: Le Cardial franco-ibérique apparaît dès 5 700 / 5 600 ANE en France, il se limite à la Provence et au Languedoc.
Claire Manen et Philippe Sabatier, « Chronique radiocarbone de la néolithisation en Méditerranée nord-occidentale», Bulletin de la Société Préhistorique Française, vol. 100, no 3, 2003, p. 479-504
Une introduction au néolithique
Le mouton n’est pas une espèce indigène de la France. Il est introduit avec les autres animaux domestiques (chèvre, porc, bœuf) et les premières céréales au Néolithique ancien. Les données archéozoologiques les plus fiables (ex. sites de Taï et Gazel) situent cette arrivée au début du VIᵉ millénaire ANE, d’abord sur le littoral méditerranéen, avec les premières communautés Impressa, puis Cardial/Epicardial (5 450–4 700 ANE) (Scientific Reports, 2020 – Manen et al. 2018 (Radiocarbon) pour la chronologie, et par les synthèses archéozoologiques de Vigne et Helmer sur les premiers Ovis domestiques du Midi).
Attestation chrono-culturelle de la période mentionnée : Tornero, C., Balasse, M., Bréhard, S., Carrère, I., Fiorillo, D., Guilaine, J., Vigne, J.-D. & Manen, C. (2020). Early evidence of sheep lambing de-seasoning in the Western Mediterranean in the sixth millennium ANE. Scientific Reports, 10, 12798. DOI : 10.1038/s41598-020-69576-w.
Les anciennes attributions de restes ovins au Mésolithique occidental ont fait l’objet de réexamens stratigraphiques et chronologiques importants. Dans le cas de La Font-aux-Pigeons, les nouvelles datations ont notamment invalidé l’ancienne interprétation d’une continuité stratigraphique entre les occupations mésolithiques et cardiales (les nouveaux modèles radiocarbone placent les niveaux mésolithiques vers 6460–6200 cal BC et les niveaux cardiaux vers 5260–4860 cal BC, avec un hiatus attribué à l’érosion). Les données actuellement les mieux établies situent l’introduction du mouton domestique dans le néolithique. Aucune preuve archéozoologique n’étaye l’existence de moutons domestiques avant le Néolithique.
Caractères morphologiques initiaux
Les premiers moutons domestiques du Néolithique diffèrent des races actuelles :
Les premiers moutons domestiques ne possédaient probablement pas les toisons homogènes et continuellement croissantes caractéristiques de nombreuses races lainières modernes. Les formes primitives conservaient une forte diversité de fibres et, chez certains types, une mue saisonnière permettant la récolte de la toison sans tonte.
La taille est proche de l’ancêtre sauvage, avec une réduction progressive au fil des millénaires (liée à la domestication et à l’adaptation aux milieux méditerranéens).
Sources :
Daly, K. G. et al. (2025). Ancient genomics and the origin, dispersal, and development of domestic sheep. Science, 387(6733), 492–497. DOI : 10.1126/science.adn2094. Publié le 30 janvier 2025
Scientific Reports (2020). Early evidence of sheep lambing de-seasoning in the Western Mediterranean in the sixth millennium ANE. DOI: 10.1038/s41598-020-69576-w.
Antiquity (Cambridge). In pursuit of a missing transition: the Mesolithic and Neolithic radiocarbon chronology at La Font-aux-Pigeons rockshelter.
Du Néolithique à l’âge du Bronze
Une fonction polyvalente car au Néolithique, le mouton devient un élément central des économies agropastorales méditerranéennes. Avec la viande c’est un abattage préférentiel des jeunes mâles (profil d’abattage orienté viande), attesté par les analyses archéozoologiques (Jeanjean et al., 2025). Les femelles semblent plus réservées pour la reproduction et la production laitière. L’exploitation textile intensive de la toison semble s’être développée progressivement. Les premières toisons étaient probablement plus hétérogènes que celles des races lainières spécialisées modernes, tandis que la sélection des fibres devient plus visible dans les données archéologiques de l’âge du Bronze et surtout de l’âge du Fer (Rast-Eicher & Jørgensen).
Évolution morphométrique
Une étude morphométrique des caprinés de la Méditerranée nord-occidentale (Jeanjean, M. et al. (2025), The Holocene, 35(5), 491–506, DOI 10.1177/09596836251313633) est fondée sur la réduction progressive de la taille morphométrique de la troisième molaire inférieure (standard en archéozoologie)et utilisée comme indicateur de l’évolution de la taille et de la morphologie des animaux tout au long du Néolithique.
Plusieurs mécanismes peuvent avoir contribué à cette évolution : sélection zootechnique, changements alimentaires et environnementaux, structure démographique des troupeaux et renouvellement des populations animales. Les données disponibles ne permettent pas d’attribuer la diminution de taille à un facteur unique
L’évolution vers des toisons plus homogènes et continuellement croissantes semble avoir été progressive. Les données textiles de l’âge du Bronze montrent encore la présence de toisons primitives et hétérogènes, tandis que certaines populations présentent déjà une sélection des fibres. Rast-Eicher & Bender Jørgensen montrent une sélection des fibres dès l’âge du Bronze et une amélioration de certaines laines à l’âge du Fer(à Hallstatt) . Leur étude indique que des toisons à croissance continue nécessitant la tonte apparaissent dans certains contextes, tandis que l’épilation/plucking continue également d’exister dans certaines régions et périodes. Cette évolution doit être comprise comme un processus de sélection progressive plutôt que comme l’apparition soudaine d’une “race à laine”.
Note : la laine est de la fibre de duvet chez le mouton moderne contrairement aux poils de couverture. Chez le mouton primitif et le mouflon sauvage il tombe partiellement pendant la saison chaude, la mue saisonnière est une mue fonctionnelle. Chez les moutons à laine il domine le pelage et subsiste en grande partie tout au long de l’année. La laine et les poils de mouton sauvage ne diffèrent pas dans leur structure intime, la paléogénétique montre une importante contribution d’ascendance liée aux populations de la steppe occidentale à l’âge du Bronze, sans permettre à elle seule d’attribuer à cette contribution l’apparition des toisons lainières. Les gènes (ex gène KRTAP)ne sont pas tous identifiés.
Source : Jeanjean, M., Mureau, C., Valenzuela-Lamas, S. et al. (2025). 8000 Years of morphometric evolution of sheep, goat and pig in the northwestern Mediterranean basin. The Holocene, 35(5). DOI: 10.1177/09596836251313633.
Âge du Fer, Antiquité, Moyen Âge
Inversion de tendance et augmentation de la taille (IIᵉ âge du Fer – fin de l’Empire romain)
Après une diminution de taille enregistrée jusqu’au Iᵉʳ âge du Fer, la tendance s’inverse entre le IIᵉ âge du Fer et la fin de l’Empire romain (augmentation de la taille des moutons Jeanjean et al., 2024).
Plusieurs mécanismes pourraient expliquer cette évolution, des changements dans les populations animales, les pratiques de sélection et d’élevage, ainsi que l’intensification des échanges et de la mobilité des troupeaux ( transhumance).
La structuration géographique des troupeaux : La répartition des troupeaux est influencée par l’altitude, la topographie, le type de site. A la pèriode romaine il y a transformation et intensification des systèmes d’élevage (Jeanjean et al., 2024)
Moyen-âge
Dans le corpus étudié du nord-ouest méditerranéen, les trajectoires morphométriques montrent de nouvelles variations après l’Antiquité. Plusieurs facteurs d’élevage et d’environnement pourraient y avoir contribué, mais leur importance relative reste difficile à établir.
On observe une diminution de la taille (comme analysé chez la chèvre et le porc) entre l’Antiquité et le Moyen Âge, Jeanjean et al. 2025 (The Holocene, corpus « 8000 ans » jusqu’aux populations actuelles).
Transhumance
Définition : La transhumance est un déplacement saisonnier de personnes et de leur bétail entre plusieurs régions géographiques ou climatiques.
Des formes de mobilité pastorale saisonnière sont documentées dès le Néolithique et deviennent mieux attestées dans plusieurs régions méditerranéennes à l’âge du Fer (Varkuleviciute, K. et al. (2021). Transhumance in the Early Neolithic? Carbon and oxygen isotope insights into sheep husbandry at Arene Candide, Northern Italy. Journal of Archaeological Science: Reports, 40, 103240. DOI: 10.1016/j.jasrep.2021.103240.) et généralisée dans l’Antiquité (Burillo-Mozota & Ibáñez-Hervás, 2022).
Des indices isotopiques suggèrent une mobilité verticale saisonnière de certains moutons à Arene Candide vers 5400–5300 ANE, constituant l’une des plus anciennes preuves de ce type de pratique en Méditerranée.
Jeanjean et al. (2024). Multifactorial temporo-spatial structuring of the morphological diversity of domestic pigs, sheep, and goats between Catalonia (Spain) and Languedoc (France) from the Iron Age to Antiquity. Archaeological and Anthropological Sciences, 16. DOI: 10.1007/s12520-024-02132-z.
Les moutons modernes
Augmentation de la taille et réduction de la variabilité : une étude morphométrique dentaire menée jusqu’aux populations actuelles (Jeanjean et al., 2025) montre une nouvelle augmentation de la taille des moutons à partir de l’époque moderne et une réduction de la variabilité morphologique. La sélection a été renforcée par les éleveurs pour des critères économiques (viande, lait, laine).
La comparaison avec la chèvre met en évidence des trajectoires morphométriques différentes. Sur 8 000 ans, les moutons présentent une variabilité morphologique plus importante, tandis que les chèvres montrent une plus grande uniformité dans les caractères dentaires étudiés. Ces différences pourraient refléter des histoires de sélection, de gestion des troupeaux et d’adaptation environnementale différentes mais ne permettent pas de réduire l’écart entre les deux espèces à une différence générale de “rusticité”.
Une confirmation récente est apportée par la morphométrie géométrique 3D (analyse du crâne et de l’oreille interne) travaux de Hemelsdaël et al. (2025). Elle montre qu’il est possible de distinguer morphométriquement les espèces et, dans certaines analyses, les races.
Bilan
L’histoire morphologique du mouton domestique en Méditerranée occidentale est une histoire de trajectoires successives et multifactorielle, dans laquelle interviennent la sélection humaine, les pratiques d’élevage, les changements environnementaux, la mobilité des troupeaux et le renouvellement des populations animales.
Bibliographie et ressources
- Daly, K. G. et al. (2025). Ancient genomics and the origin, dispersal, and development of domestic sheep. Science, 387(6733), 492–497. DOI : 10.1126/science.adn2094.
- Tornero, C., Balasse, M., Bréhard, S., Carrère, I., Fiorillo, D., Guilaine, J., Vigne, J.-D. & Manen, C. (2020). Early evidence of sheep lambing de-seasoning in the Western Mediterranean in the sixth millennium ANE. Scientific Reports, 10, 12798. DOI : 10.1038/s41598-020-69576-w.
- Binder, D. Battentier, J., Delhon, C. & Sénépart, I. (2017). In pursuit of a missing transition… Antiquity, 91(357), 605–620. DOI : 10.15184/aqy.2017.65.
- Manen, C. & Sabatier, P. (2003). Chronique radiocarbone de la néolithisation en Méditerranée nord-occidentale. Bulletin de la Société Préhistorique Française, 100(3), 479–504.
Contribution : Chronologie du Cardial franco-ibérique (5700/5600 ANE). - Manen, C., Perrin, T., Guilaine, J. et al. (2019). The Neolithic Transition in the Western Mediterranean… Revisited. Radiocarbon, 61(2), 531–571. DOI : 10.1017/RDC.2018.98.
- Geddes, D. S. (1985). Mesolithic domestic sheep in West Mediterranean Europe. Journal of Archaeological Science, 12(1), 25–48.
Jeanjean, M. et al. (2025). 8000 Years of morphometric evolution of sheep, goat and pig in the northwestern Mediterranean basin. The Holocene, 35(5), 491 sq. DOI: 10.1177/09596836251313633.
Contribution : Évolution morphométrique (diminution de taille au Néolithique, augmentation à l’époque moderne) ; comparaison mouton/chèvre. - Jeanjean, M. et al. (2024). Multifactorial temporo-spatial structuring of the morphological diversity of domestic pigs, sheep, and goats between Catalonia (Spain) and Languedoc (France) from the Iron Age to Antiquity. Archaeological and Anthropological Sciences, 16. DOI: 10.1007/s12520-024-02132-z.
Contribution : Augmentation de taille à l’Âge du Fer ; structuration géographique des troupeaux. - Jeanjean, M. et al. (2025). Two species, two stories: divergent morphometric evolution of sheep and goats over the last 8000 years. Philosophical Transactions of the Royal Society B, 380(1926). DOI: 10.1098/rstb.2024.0514.
Contribution : Comparaison mouton/chèvre ; pressions sélectives divergentes. - Hemelsdaël, A. et al. (2025). Skull and inner ear morphometrics in sheep and goats: species and breed differentiation with bioarchaeological applications. Royal Society Open Science, 12(12). DOI: 10.1098/rsos.251575.
Burillo-Mozota, F. et al. (2023). The Conquense transhumance route in Spain… Small Ruminant Research. - Rast-Eicher, A. & Bender Jørgensen, L. (2013). Sheep wool in Bronze Age and Iron Age Europe. JAS, 40(2), 1224–1241.
- Muséum National d’Histoire Naturelle (MNHN). (2024). L’origine du mouton domestique enfin élucidée. En ligne.
Contribution : Synthèse grand public sur les origines génétiques du mouton.